얼룩말 몸에는 줄무늬가, 표범 몸에는 점이 있고, 치타 꼬리에는 줄로 된 부분이 있다. 오래 쓰여 온 설명에서는 피부 속에 무늬를 늘리는 물질과 누르는 물질이 함께 퍼진다고 본다. 누르는 쪽이 더 멀리 퍼지면, 고르던 피부에 점이나 줄이 저절로 생길 수 있다. 실험으로 확인된 곳은 물고기 피부이고, 얼룩말·표범은 아직 모형 수준이다. 같은 규칙에 몸의 크기와 굵기만 바꿔 넣은 계산에서는 너무 작은 몸에 무늬가 아예 없었고, 가는 원기둥 모양의 몸에는 둘레를 두르는 띠만 났다. 이렇게 고르던 바탕에 저절로 생기는 무늬를 튜링 패턴(Turing pattern)이라고 한다.
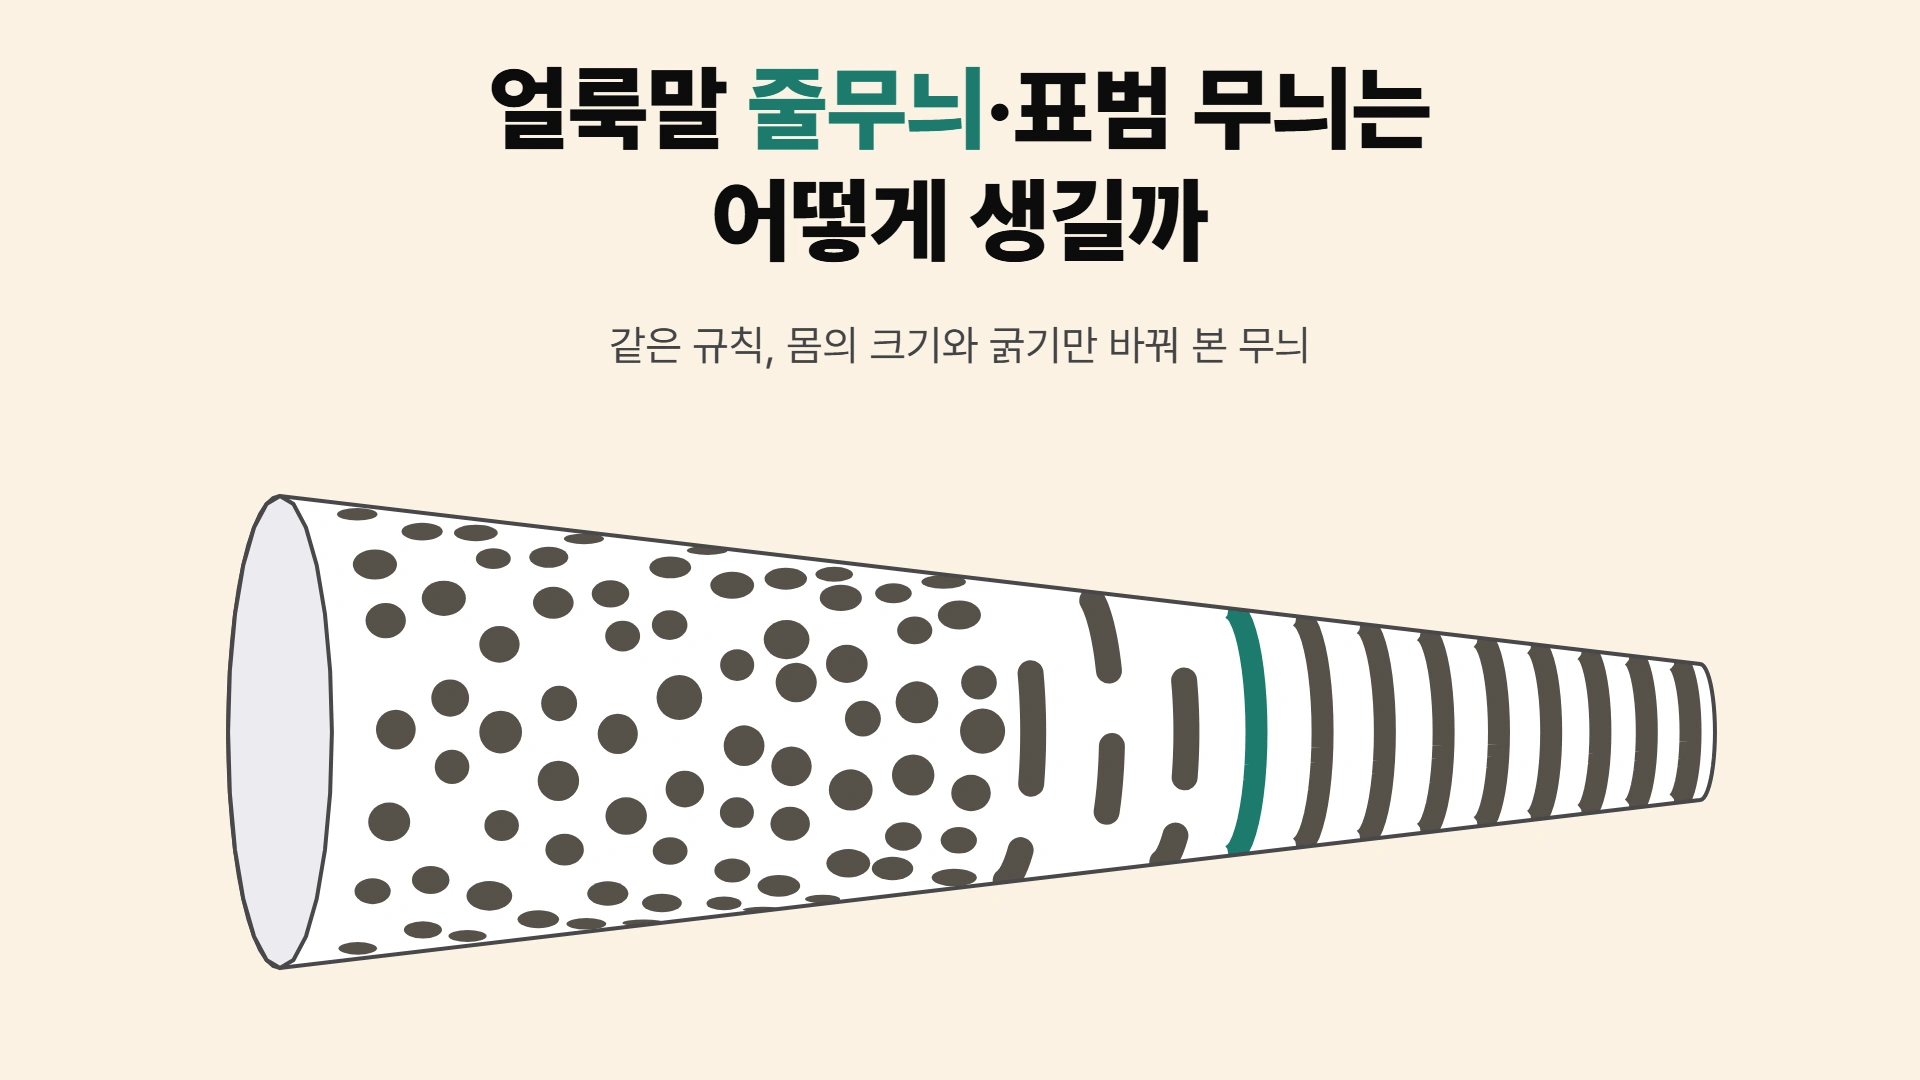
치타의 몸통은 온통 점박이다. 그런데 털가죽이 꼬리로 이어지면, 어느 부분부터는 점 대신 줄이 보인다. 한 동물의 털에 점과 줄이 함께 나오는 셈이다. 그렇다면 얼룩말 줄무늬와 표범 무늬는 어떻게 생길까?
피부 속에서 무늬를 늘리는 물질과 누르는 물질이 함께 퍼진다고 하자. 누르는 쪽이 더 멀리 퍼지면, 처음에 고르던 피부에 점이나 줄이 저절로 생길 수 있다. 이렇게 생기는 무늬를 튜링 패턴(Turing pattern)이라고 부른다. 2024년의 한 리뷰는 얼룩말 줄무늬와 표범 점이 "have long been described as being a Turing pattern"(오래 튜링 패턴으로 설명돼 왔다)이라고 썼다. 근거로는 단순한 모형에서도 비슷한 무늬가 쉽게 나온다는 점을 들었다. 이 설명은 물고기 피부에서는 실험으로 확인됐지만, 얼룩말과 표범에서는 아직 모형과 정황 수준이다.
「얼룩말 줄무늬 이유」를 검색한 사람은 줄무늬가 어디에 쓰이는지를 물었을 수도 있다. 그것은 「어떻게 생기나」와 다른 물음이다. 쓰임 쪽에서 지금 가장 강한 근거는 피를 빠는 파리가 줄무늬에 덜 앉는다는 연구들이다. 다만 2025년의 한 리뷰는 그것 하나로는 왜 얼룩말에만 줄무늬가 유독 뚜렷한지 설명하기 어렵다고 썼다. 이 글은 「어떻게 생기나」를 다룬다.
두 물질이 다른 속도로 퍼지면
이 설명의 출발점은 1952년 앨런 튜링(Alan Turing)의 논문 「The Chemical Basis of Morphogenesis」다. 튜링은 이 논문에서 동물 무늬의 정답을 내놓지 않았다. 그가 내놓은 것은 가능성이었다.
It is suggested that a system of chemical substances, called morphogens, reacting together and diffusing through a tissue, is adequate to account for the main phenomena of morphogenesis. Such a system, although it may originally be quite homogeneous, may later develop a pattern or structure due to an instability of the homogeneous equilibrium, which is triggered off by random disturbances.
(서로 반응하면서 조직 속으로 퍼지는 화학 물질 몇 가지만으로도, 생물의 모양이 잡히는 주요 현상을 설명하기에 충분하다고 제안한다. 이런 계는 처음에는 아주 고르더라도, 고른 균형이 무작위 흔들림을 계기로 무너지면서 나중에 무늬나 구조가 생길 수 있다.)
A. M. Turing, 「The Chemical Basis of Morphogenesis」, Philosophical Transactions of the Royal Society of London B 237(1952), 초록튜링은 이 생각을 손으로 계산할 수 있을 만큼 작은 예로 보였다. 세포 두 개가 나란히 붙어 있고, 그 안에서 물질 두 가지가 서로를 늘리거나 줄인다. 튜링은 두 물질이 농도가 낮은 옆 세포 쪽으로 퍼지게 하되, 첫째 물질은 0.5의 빠르기로, 둘째 물질은 4.5의 빠르기로 놓았다. 둘째 물질이 9배 빨리 퍼지는 설정이다. 처음 농도는 두 물질이 늘지도 줄지도 않고 머무는 값 1에서 조금씩만 어긋나게 두었다. 한 세포는 첫째·둘째 물질이 1.06과 1.02, 다른 세포는 0.94와 0.98로 시작했다.
계산해 보면 이 작은 어긋남이 줄어들지 않고 커진다. 튜링의 문장으로는 "accentuate the already existing differences between the two cells"(두 세포 사이에 이미 있던 차이를 더 키운다)다. 같은 예를 이 글에서 다시 계산해 보니, 둘째 물질도 첫째와 같은 0.5로 퍼지게 하면 차이가 줄어들어 사라졌다. 둘째 물질이 1.0으로, 곧 2배 빨리 퍼질 때가 차이가 자라지도 줄지도 않는 경계였다.
튜링 원문에는 얼룩말도 표범도 나오지 않는다. 동물 무늬로 든 것은 「얼룩(dappled)」 무늬 한 가지와, 손으로 몇 시간 계산해 얻은 2차원 무늬 그림 한 장이다. 튜링 스스로도 이 모형이 단순화이고 그래서 실제와 어긋날 수밖에 없다고 적었다.
지금은 무늬를 늘리는 쪽을 활성자(activator), 누르는 쪽을 억제자(inhibitor)라고 부르는 일이 많다. 활성자는 자기 농도를 높이면서 억제자도 함께 만들어 내고, 억제자는 그 활성자를 눌러 무늬를 끈다. 이 두 이름은 튜링의 낱말이 아니다. 1988년 『사이언티픽 아메리칸』에 실린 James D. Murray의 기사가 이 짝을 이렇게 풀었다.
Murray는 억제자가 활성자보다 빨리 퍼지면, 억제자가 많은 바탕 속에 활성자가 많은 섬이 생긴다고 설명했다. 튜링의 예에서도 둘째 물질은 첫째 물질이 생기는 양을 줄이는 쪽이라, 이 짝으로 읽힌다. 같은 기사에서 그는 두 물질이 같은 속도로 퍼지면 고른 상태에서 벗어난 흔들림이 모두 펴진다고 썼다. 앞에서 이 글이 다시 계산한 튜링의 두 세포 예도 같은 쪽을 가리킨다. 빠르기가 다를 때만 차이가 남아 자랄 수 있다.
억제자가 더 멀리 퍼지면
여기부터 나오는 판은 이 글이 돌린 장난감 모형이다. 무늬를 늘리는 물질과 누르는 물질 두 개를 담은 간단한 식이고, 튜링의 식도 Murray의 식도 아니다. 칸과 시간은 단위가 없는 모형 값이라서, 칸을 mm나 cm로, 시간을 초나 날로 읽으면 안 된다. 판마다 무작위 시작을 3번씩 돌렸고, 「무늬가 났다」고 판정하는 기준은 이 글이 정했다.
한 변이 64칸인 판에서 억제자가 활성자보다 몇 배 빨리 퍼지는지만 바꿔 보았다. 식의 꼴은 하나로 두고, 두 물질이 서로를 늘리고 줄이는 식 속 숫자 하나만 다르게 한 두 묶음의 값으로 돌렸다. 무늬가 나면 한 묶음에서는 줄과 미로 같은 모양이, 다른 묶음에서는 점이 났다. 이 글은 앞의 묶음을 「줄 쪽 설정」, 뒤의 묶음을 「점 쪽 설정」이라고 부른다. 나온 무늬의 모양으로 붙인 이름이고, 얼룩말이나 표범에 맞춘 값은 아니다.
두 설정 모두 1배와 4배에서는 판이 끝까지 한 색이었고, 6.5배·8배·12배에서는 무늬가 났다. 아주 작은 흔들림이 자라느냐만 따지는 계산도 이렇게 돌린 판 30장의 결과와 모두 맞았다. 같은 빠르기(1배)로 퍼지게 한 판에서는 처음 흔들림이 모형 시간 25쯤부터 소수 여섯째 자리까지 0으로 지워졌다. Murray가 말한 「같은 속도면 펴진다」와 같은 방향이다.
같은 설정에서 무작위 시작만 바꿔 보기도 했다. 점 쪽 설정으로 판 8장을 돌리자 8장 모두 점이 났고, 점은 22~26개였다. 그런데 점이 같은 자리에 난 판은 한 쌍도 없었다. Murray도 같은 모양과 크기에서는 무작위 시작이 달라도 무늬가 비슷하고 "only the distribution of spots varies"(점이 놓인 자리만 달라진다)라고 썼다. 얼룩말마다 줄무늬가 조금씩 다른 이유를 이 모형 안에서 답하면, 무늬가 처음의 작은 무작위 흔들림에서 자라기 때문이다.
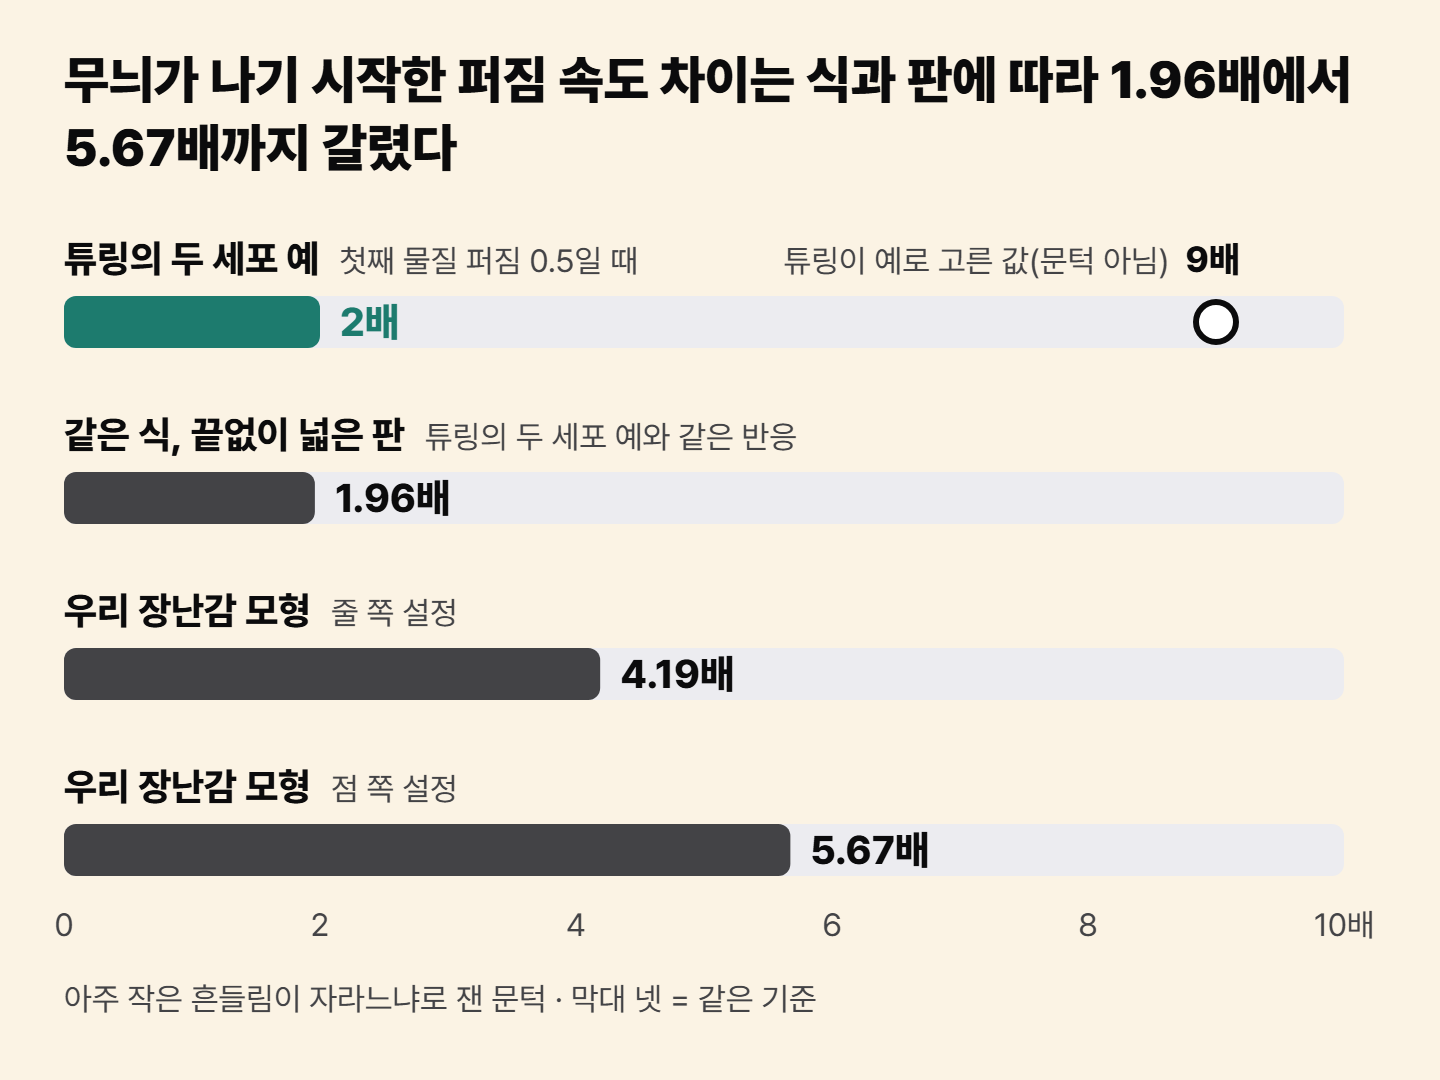
그림 1는 억제자가 활성자보다 몇 배 빨리 퍼져야 무늬가 나기 시작하는지, 그 문턱 넷을 한 자로 모은 그림이다. 튜링의 두 세포 예에서는 2배, 그 예와 같은 식을 끝없이 넓은 판에 놓으면 1.96배였다. 장난감 모형에서는 줄 쪽 설정이 4.19배, 점 쪽 설정이 5.67배였다. 첫 줄의 빈 동그라미가 튜링이 예로 고른 9배인데, 문턱보다 한참 위에 있는 값이다. 억제 쪽이 더 멀리 퍼져야 한다는 것까지가 공통이고, 몇 배인지는 식마다 다르다.
몸이 너무 작으면
이제 규칙은 고정한다. 억제자가 활성자보다 8배 빨리 퍼지는 점 쪽 설정으로, 앞에서 무늬가 난다고 확인한 규칙이다. 바꾸는 것은 판의 크기, 곧 몸의 크기 하나다. 판의 네 가장자리는 막아 두었다. 그래서 물질은 판 밖으로 빠져나가지도, 반대편 가장자리로 이어지지도 않는다. 아래 그림의 「가장자리 막힘」이 이 설정이다.
그림 2에서는 판 한 변을 3·5·12·32·64칸 가운데 골라 볼 수 있다. 그림 제목에 답의 일부가 먼저 적혀 있으니, 그림을 보기 전에 아래 표의 가운데 칸부터 짐작해 본다. 그림에서 밝은 곳은 늘리는 물질, 곧 활성자가 많은 곳이다.
| 판 한 변 | 먼저 짐작해 볼 것 | 그림에서 볼 것 |
|---|---|---|
| 3칸 | 무늬가 날 자리가 있을까? | 모양 칩 |
| 12칸 | 덩어리가 몇 개쯤 날까? 무작위 시작마다 같을까? | 덩어리 수 칩 · 아래 줄의 세 값 |
| 64칸 | 32칸보다 몇 배쯤 많을까? 넓이처럼 4배로 늘까? | 덩어리 수 칩 · 아래 줄의 세 값 |
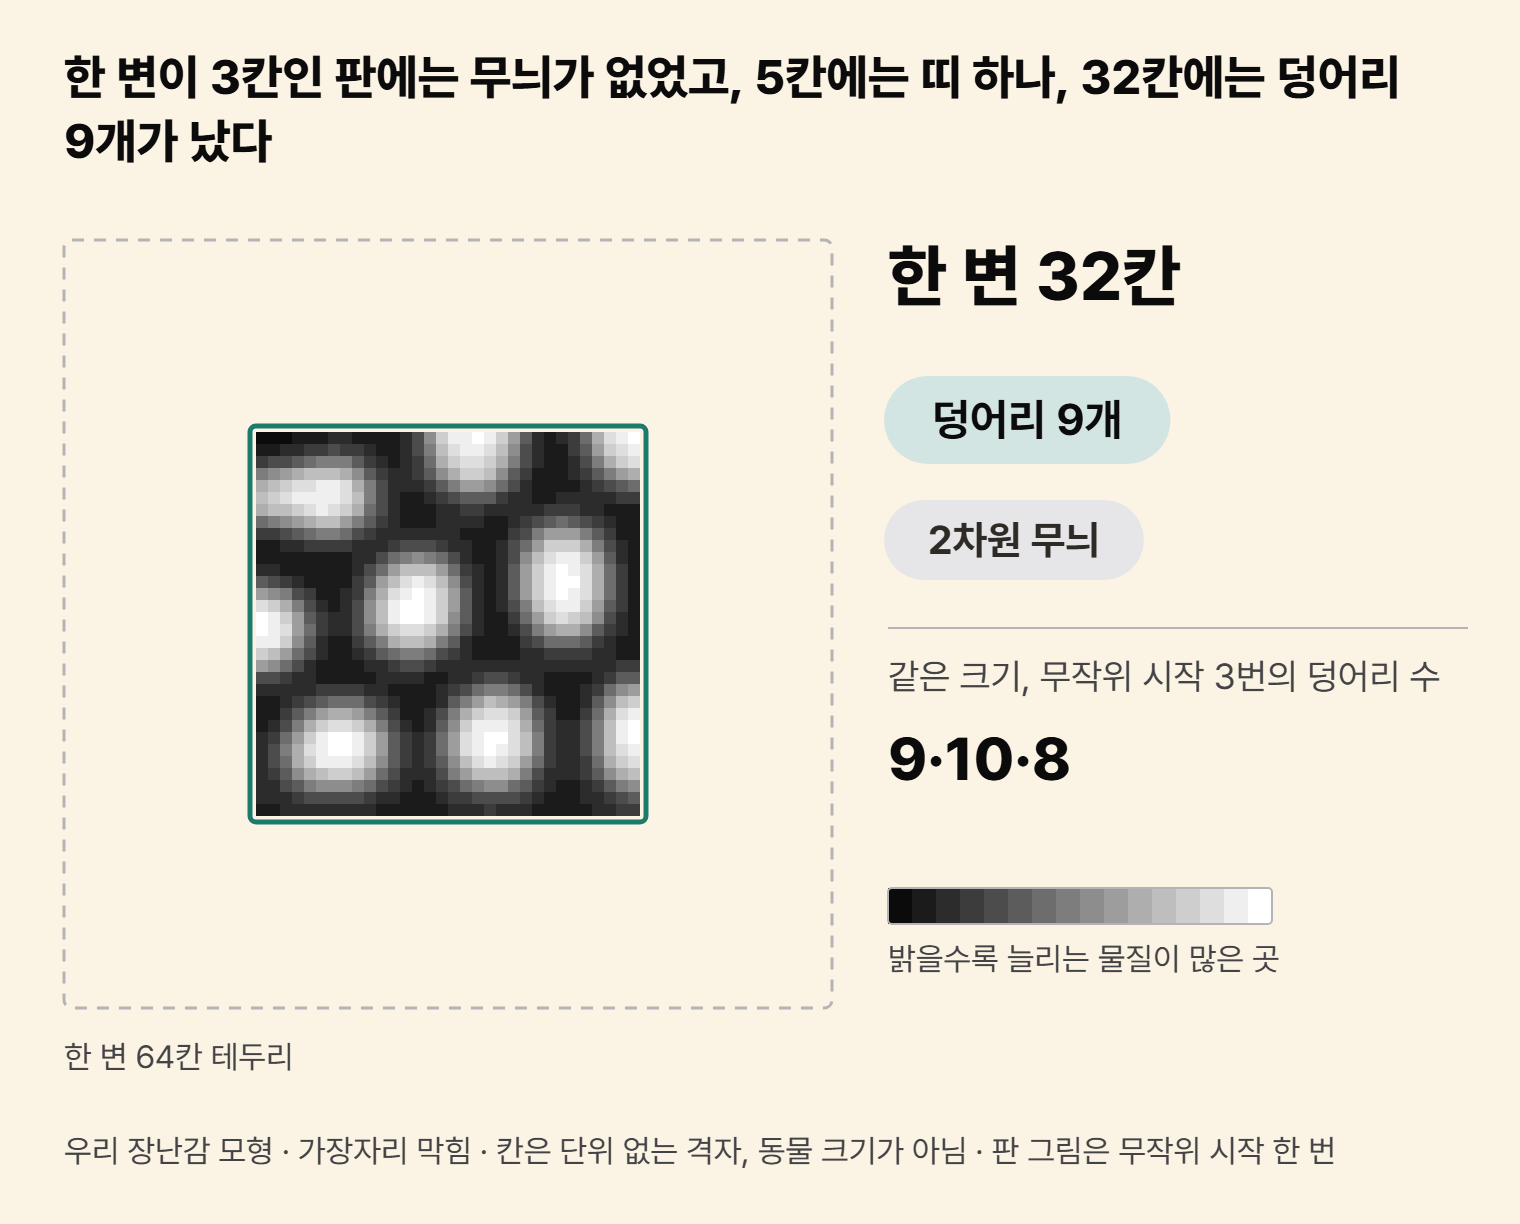
한 변이 2칸과 3칸인 판에서는 무늬가 나지 않았다. 4칸은 계산으로는 아주 느리게 자라는 크기지만, 돌린 모형 시간 600 안에서는 세 번 모두 한 색이었다. 5칸에서는 세 번 모두 띠 하나가 났다. 한 방향으로는 밝음과 어둠이 바뀌고 그와 직각인 방향으로는 한 색인 띠로, 그림 칩의 「한 방향 띠」가 이것이다. 12칸에서는 덩어리가 3개, 3개, 1개였고, 1개였던 셋째 시작은 한 방향 띠 하나로 끝났다. 판이 작으면 같은 크기에서도 무작위 시작에 따라 모양이 갈린다.
판이 커지면 덩어리도 늘었다. 32칸에서는 9개, 10개, 8개였고, 64칸에서는 29개, 33개, 30개였다. 덩어리가 점이라고 부를 만한 모양으로 판정된 것은 한 변 48칸과 64칸 판에서였다. 32칸에서 64칸으로 가면 넓이는 4배가 되지만, 64칸에서 가장 많았던 33개도 32칸 세 번의 평균 9개를 4배 한 36개에 못 미쳤다. 벽에 붙은 반쪽 덩어리가 작은 판에서 상대적으로 많이 세어지기 때문으로 보인다. 그래서 판이 커지면 덩어리가 는다고까지는 말할 수 있어도, 넓이에 맞춰 는다고는 말할 수 없다.
무늬가 처음 서는 판의 크기는 무늬 간격으로 가늠할 수 있다. 이 규칙에서 가장 빨리 자라는 무늬의 간격은 11.8칸이지만, 그보다 촘촘한 무늬도 간격이 약 8.2칸이 될 때까지는 자랄 수 있다. 8.2칸은 칸을 잘게 쪼갠 매끈한 판으로 어림한 값이다. 가장자리가 막힌 판에서는 밝은 곳과 어두운 곳이 한 번만 갈려도 무늬가 되므로, 판 한 변이 그 간격의 절반인 약 4칸이면 무늬가 자랄 수 있다. 4칸이 아주 느리게나마 자라는 크기였던 것도 이 경계에 걸쳐 있어서다. 그보다 조금 큰 5칸에서 무늬가 처음 섰다.
Murray도 기사에서 같은 방향의 모형 결과를 적었다. 판이 너무 작으면 무늬가 생기지 않고, 판을 키우면 더 많은 점이 나타난다. 무늬가 자라려면 밝음과 어둠이 한 번 갈릴 폭만큼은 판이 커야 한다.
몸이 가는 원기둥이면
동물의 다리나 꼬리는 납작한 판보다 원기둥에 가깝다. 그래서 같은 규칙을, 둘레를 따라가면 끝 칸이 처음 칸에 다시 이어지는 원기둥에 놓아 보았다. 둘레만 다르고 굵기는 일정한 원기둥을 여러 개 돌렸으므로, 끝으로 갈며 가늘어지는 꼬리 하나를 흉내 낸 것은 아니다.
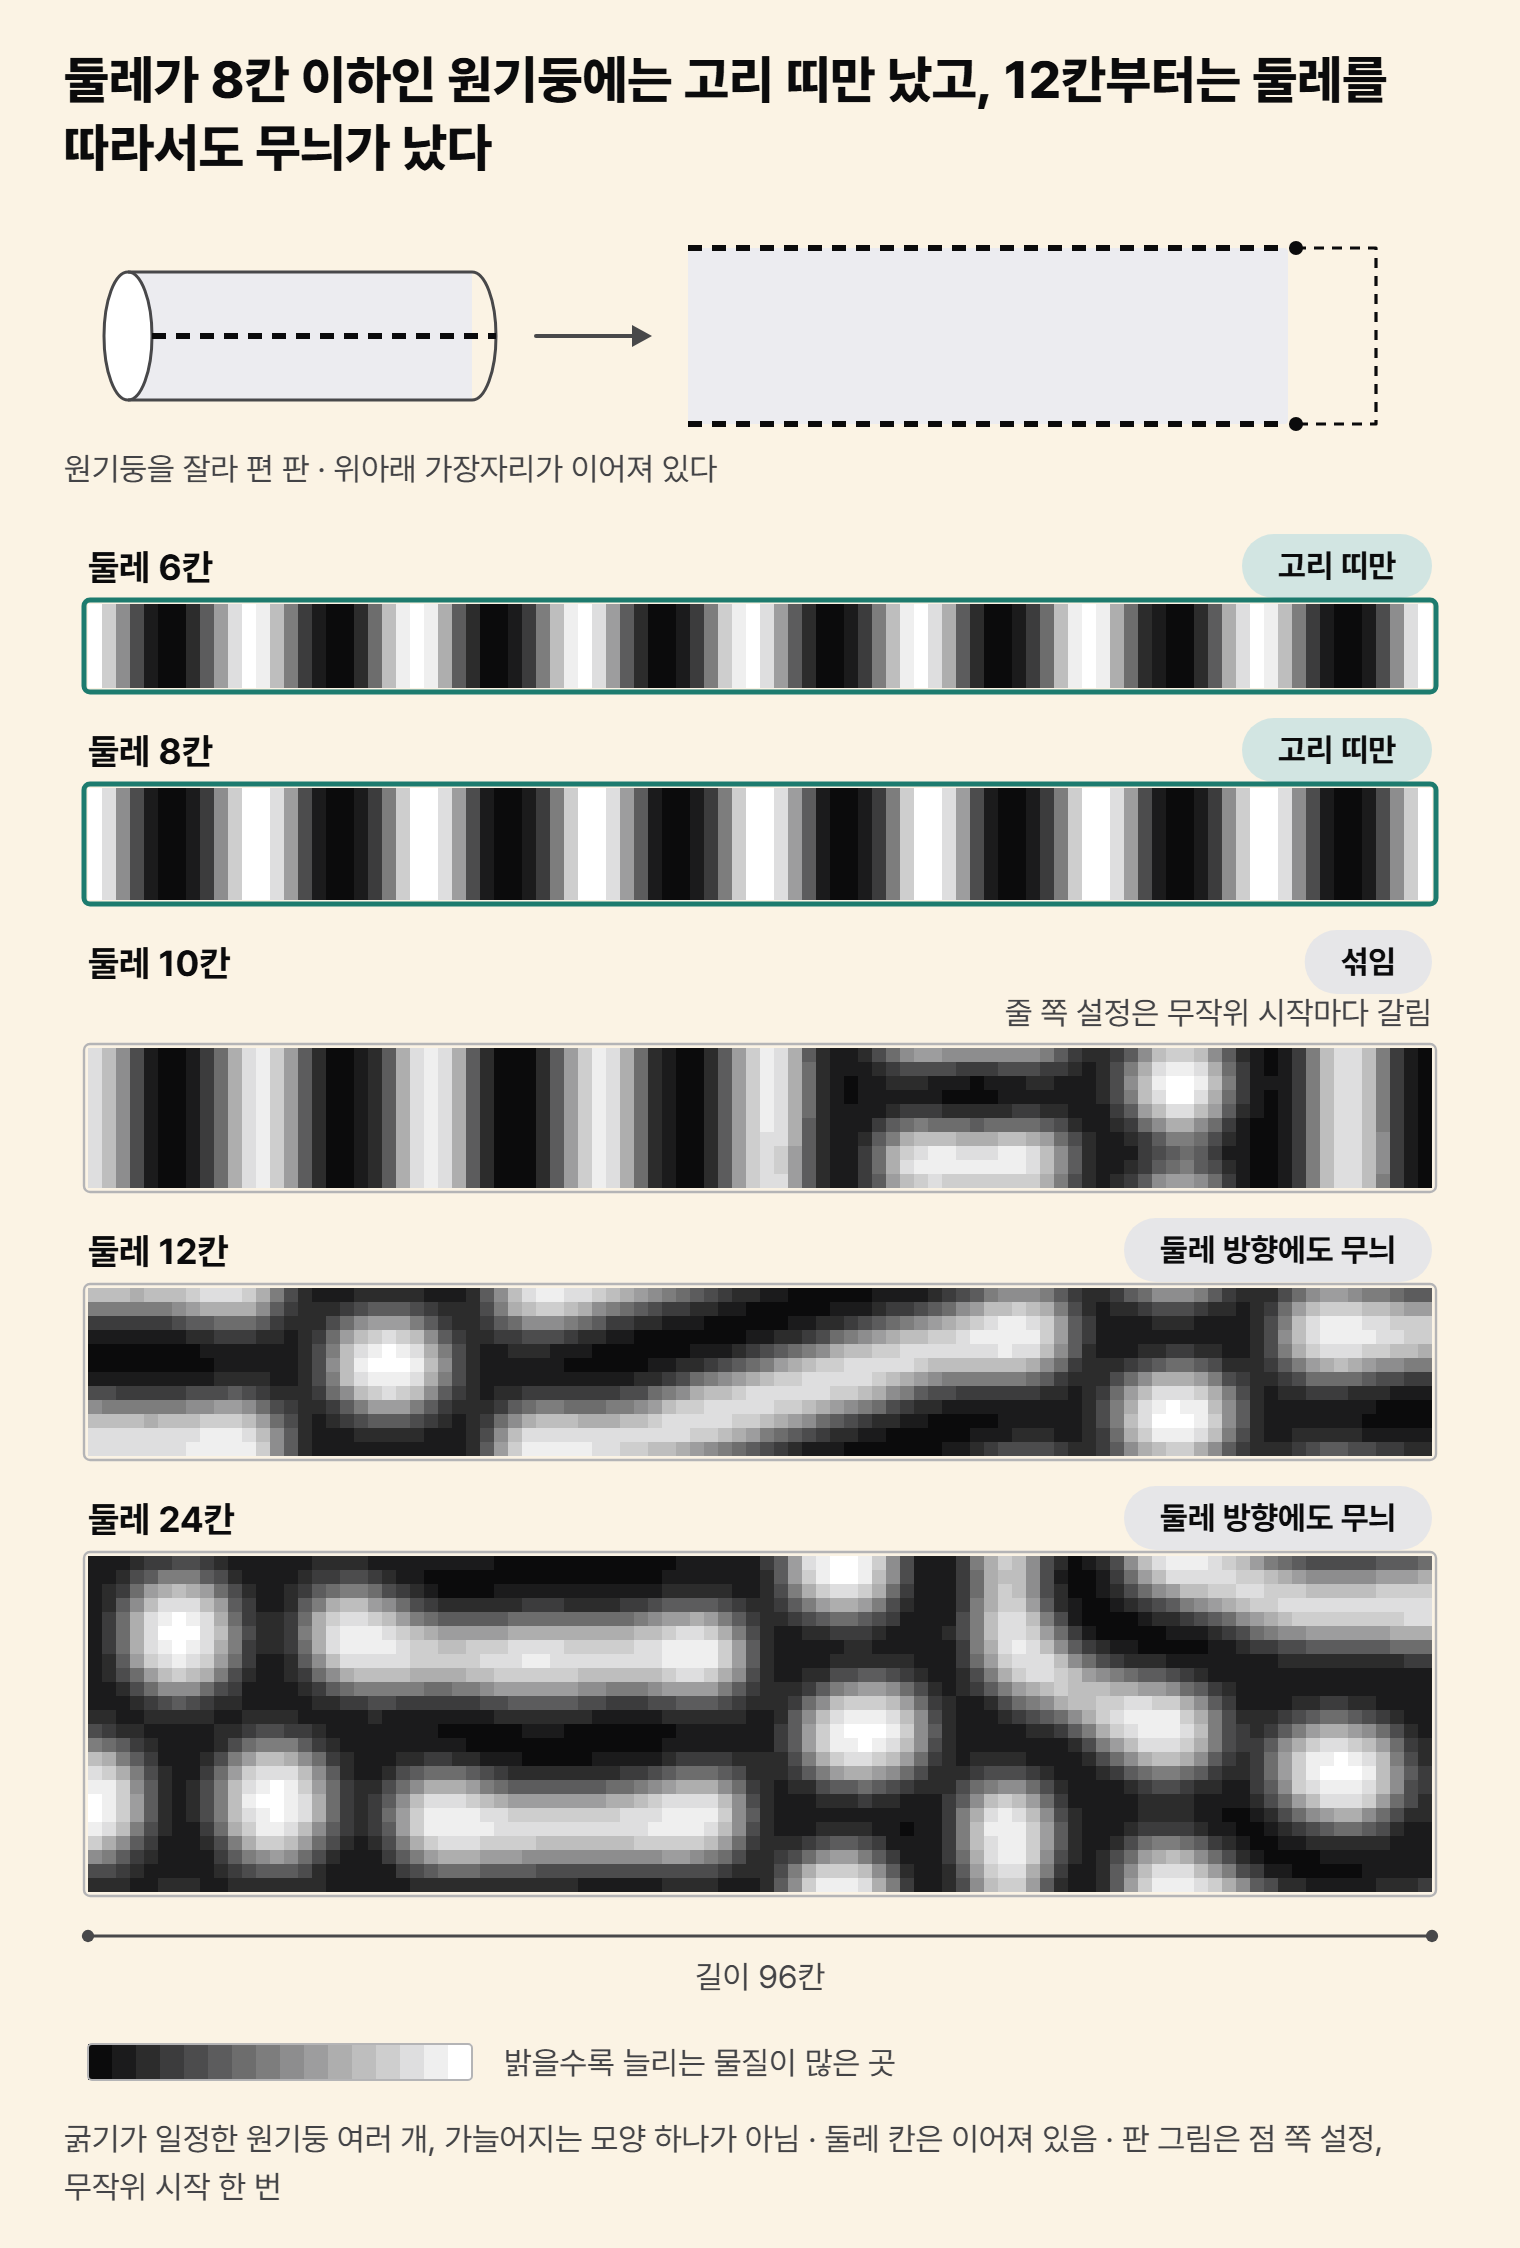
그림 3 위쪽의 작은 도해는 원기둥을 길이 방향으로 한 줄 잘라 납작하게 편 모습이다. 그래서 편 판의 위 가장자리와 아래 가장자리는 원래 붙어 있던 자리이고, 물질은 그 사이를 그대로 오간다. 아래 판 다섯은 이렇게 편 원기둥들로, 위아래 폭이 곧 둘레다.
둘레가 4칸·6칸·8칸인 원기둥은 두 설정 모두, 무작위 시작 세 번 모두 고리 띠만 났다. 둘레를 따라서는 한 색이고, 길이 방향으로만 밝음과 어둠이 바뀌는 무늬다. 둘레 10칸은 갈렸다. 점 쪽 설정에서는 세 번 모두 고리와 둘레 방향 무늬가 섞였고, 줄 쪽 설정에서는 한 번은 고리만, 두 번은 둘레 방향으로도 무늬가 났다. 둘레가 12칸 이상이면 두 설정 모두 둘레를 따라서도 무늬가 났다.
납작한 판에서는 한 변 5칸에도 무늬가 섰는데, 원기둥은 둘레가 8칸이어도 고리 띠만 났다. 둘레는 한 바퀴 돌면 제자리로 이어지기 때문이다. 한 번 갈린 밝음과 어둠이 한 바퀴 뒤 처음 색으로 돌아와 맞물려야 하니, 막힌 판처럼 간격의 절반이 아니라 가장 짧은 간격 하나가 통째로 들어갈 둘레가 필요하다. 점 쪽 설정으로 셈하면 그 경계가 둘레 약 8칸인데, 이 크기에서는 둘레 방향 무늬가 너무 느리게 자라 고리 띠만 남았다. 둘레가 이보다 짧으면 무늬는 길이 방향으로만 바뀐다.
Murray의 기사에도 같은 방향의 서술이 있다. 끝으로 가며 가늘어지는 원기둥에서는 무늬가 2차원 무늬에서 단순한 줄로 넘어갈 수 있다는 것이다. 우리가 돌린, 굵기가 일정한 원기둥들에서도 둘레가 짧으면 무늬는 둘레를 두르는 띠로만 남았다.
얼룩말 줄무늬를 실험으로 따지면
이 규칙이 살아 있는 피부에서 얼마나 확인됐는지는 동물마다 다르다. 1995년 Kondo와 Asai는 바다에 사는 엔젤피시의 줄무늬를 연구했다. 이 물고기는 자라면서 줄 사이 간격을 유지한 채 무늬를 다시 짜는데, 튜링식 계산에 바탕을 둔 시뮬레이션이 그 변화를 맞혔다. 연구진은 이 결과가 그런 방식으로 무늬가 생길 수 있다는 것을 "strongly suggests"(강하게 시사한다)라고 썼다.
2009년 Kondo 연구진은 줄무늬 열대어 제브라피시에서, 색을 내는 세포들이 서로 주고받는 작용이 가까이서 늘리고 멀리서 누르는 조건을 갖췄다고 보고했다. Kondo는 2021년 동료들과 쓴 리뷰에서, 이 물고기 피부의 무늬를 만드는 것은 화학 물질의 농도 변화가 아니라 색을 내는 세포들이 스스로 옮겨 가고 늘어나는 움직임이라고 정리했다. 그래서 퍼지는 화학 물질 둘을 담은 옛 식은 그대로 쓸 수 없다고 덧붙였다.
포유류에서는 2021년 Kaelin 연구진이 고양이 태아 피부의 분자 몇 종이 가까이서 늘리고 멀리서 누르는 짝일 수 있다는 해석을 "suggest"(시사한다) 수준으로 내놓았다. 얼룩말 배아에서 이를 실험으로 확인한 문헌은 이 글이 찾아본 범위에서 나오지 않았다. 2015년 Hiscock과 Megason은 분자·세포·힘처럼 서로 다른 방식이 비슷한 무늬를 만들 수 있음을 보이고, 그래서 무늬만 보고는 어느 방식인지 가를 수 없다고 썼다. 얼룩말 줄무늬가 이 규칙으로 생긴다는 말은 아직 모형과 무늬의 닮음에 기대고 있다.
점박이 몸에 줄무늬 꼬리가 붙으면
처음의 치타 꼬리로 돌아가 보면, Murray의 1988년 기사에 바로 이런 꼬리를 모형의 예측과 견준 대목이 있다. 그의 예측에는 조건이 붙는다. 몸의 무늬가 이런 규칙으로 잡힌다면, 점박이 동물은 줄무늬 꼬리를 가질 수 있어도 줄무늬 동물이 점박이 꼬리를 가질 수는 없다는 것이다.
Murray는 치타와 재규어의 꼬리에 줄로 된 부분이 있다는 것을 이 예측과 맞는 예로 들었다. 표범은 사정이 다르다. 표범은 꼬리 끝 가까이까지 점이 있다. Murray의 설명은 표범 태아의 꼬리가 짧고 끝이 급히 가늘어서 점이 끝까지 들어설 수 있었다는 것이다. 어른 표범의 꼬리는 길지만, 뼈마디 수는 태아 때와 같다고 그는 덧붙였다.
Murray가 든 것은 동물 몇 종이다. 줄무늬 몸에 점박이 꼬리가 붙은 반례를 보고한 문헌은 찾지 못했지만, 정말 그런 동물이 없는지 전부 조사한 문헌도 찾지 못했다. 앞의 Hiscock과 Megason도 이 꼬리 이야기를 인용하면서, 가장자리를 어떻게 두느냐로 설명될 수도 있다("may explain")는 정도로 적었다. Murray가 든 꼬리들은 지금까지 그의 예측과 어긋나지 않는 예로 남아 있다.
치타를 돌려 본 것은 아니지만, 치타의 몸통과 꼬리를 이 글의 판에 겹쳐 볼 수는 있다. 넓은 몸통은 한 변이 긴 판 쪽에, 가는 꼬리 끝은 둘레가 짧은 원기둥 쪽에 가깝다. 실제로 돌린 판에서는 한 변 64칸 판에 점이 29~33개 났고, 둘레 8칸 이하 원기둥에는 고리 띠만 났다. 이 칸 수는 치타의 실제 몸 크기에 맞춘 값이 아니다. 같은 규칙이라도 몸의 크기와 굵기가 다르면, 우리 모형에서 무늬는 아예 없거나, 점이 되거나, 둘레를 두르는 띠가 된다.
더 읽기
- A. M. Turing, 「The Chemical Basis of Morphogenesis」, Philosophical Transactions of the Royal Society of London B 237:37–72 (1952), DOI 10.1098/rstb.1952.0012 — 사본 https://www.dna.caltech.edu/courses/cs191/paperscs191/turing.pdf
- James D. Murray, 「How the Leopard Gets Its Spots」, Scientific American 258(3):80–87 (1988), DOI 10.1038/scientificamerican0388-80 — 사본 https://www.math.ttu.edu/~anpeace/files/Math5354Papers/murray_SciAm.pdf
- Kondo & Asai, 「A reaction–diffusion wave on the skin of the marine angelfish Pomacanthus」, Nature 376:765–768 (1995) https://www.nature.com/articles/376765a0
- Nakamasu, Takahashi, Kanbe, Kondo, 「Interactions between zebrafish pigment cells responsible for the generation of Turing patterns」, PNAS 106(21):8429–8434 (2009) https://pmc.ncbi.nlm.nih.gov/articles/PMC2689028/
- Kondo, Watanabe, Miyazawa, 「Studies of Turing pattern formation in zebrafish skin」, Phil. Trans. R. Soc. A 379:20200274 (2021) https://pmc.ncbi.nlm.nih.gov/articles/PMC8580470/
- Kaelin, McGowan, Barsh, 「Developmental genetics of color pattern establishment in cats」, Nature Communications 12 (2021) https://www.nature.com/articles/s41467-021-25348-2
- Hiscock & Megason, 「Mathematically guided approaches to distinguish models of periodic patterning」, Development 142:409–419 (2015) https://pmc.ncbi.nlm.nih.gov/articles/PMC4302999/
- Sudderick & Glover, 「Periodic pattern formation during embryonic development」, Biochem. Soc. Trans. 52:75–88 (2024) https://pmc.ncbi.nlm.nih.gov/articles/PMC10903485/
- (줄무늬의 쓰임) Caro 외, 「The function of zebra stripes」, Nature Communications 5:3535 (2014) https://www.nature.com/articles/ncomms4535 · How 외, 「Zebra stripes, tabanid biting flies and the aperture effect」, Proc. R. Soc. B 287:20201521 (2020) https://pmc.ncbi.nlm.nih.gov/articles/PMC7482270/ · Ireland & Ruxton, 「Zebra stripes: the questions raised by the answers」, Biological Reviews 100:2660–2680 (2025) https://pmc.ncbi.nlm.nih.gov/articles/PMC12586280/