패치 크기 분포는 식생 덩어리를 크기별로 몇 개씩 있는지 세어 그린 그래프다. Kéfi 등의 2007년 연구는 방목 압력이 있는 곳에서는 이 분포에서 큰 덩어리가 사라진다는 것을 보였다. 그런데 2009년 스페인의 29곳을 재 보니 한 곳도 빠짐없이 큰 덩어리가 없는 같은 모양이 나왔고, 경보로 삼을 정상 상태가 남지 않았다.
디스크는 여유가 있어도 큰 파일을 못 담을 때가 있다
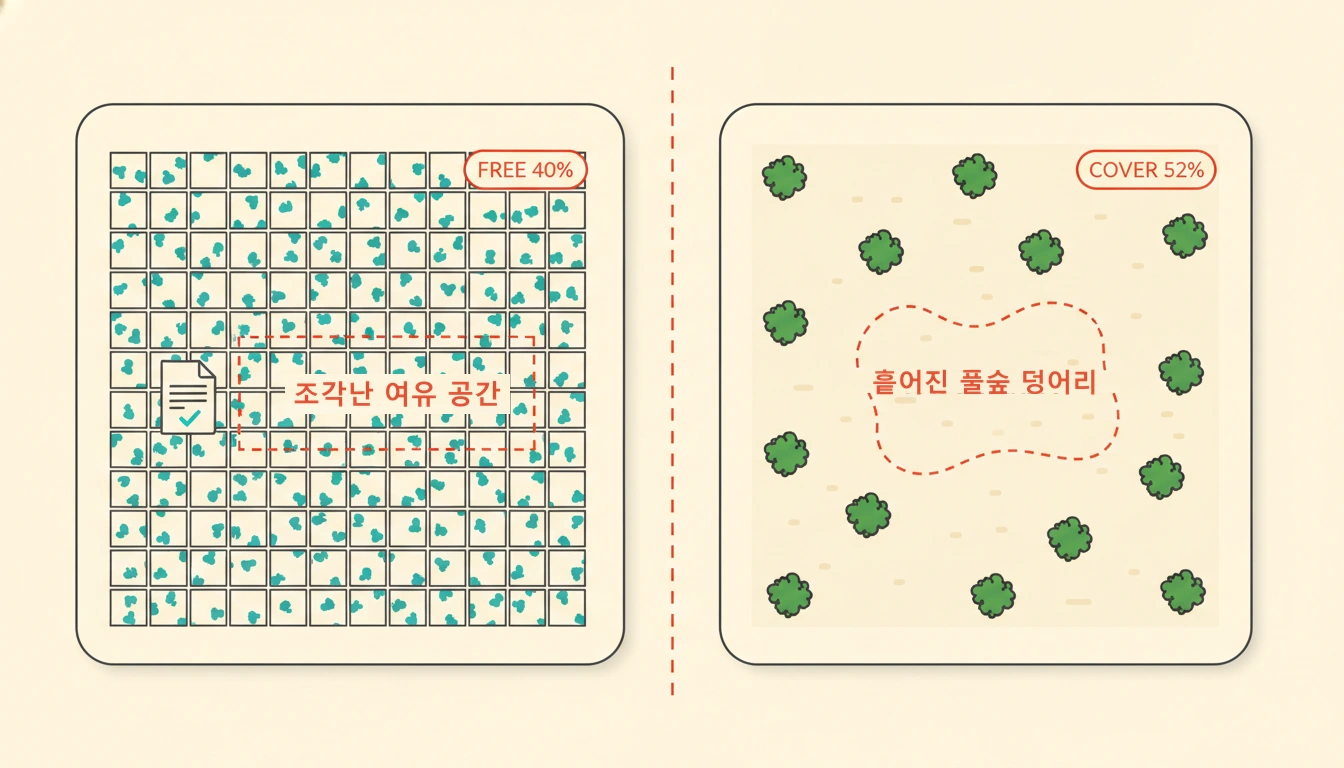
디스크 여유 공간이 40%라고 떠도 큰 파일 하나를 저장하지 못할 때가 있다. 빈 블록이 모자란 것이 아니라, 연속으로 이어진 빈 블록이 없어서다. 조각모음 도구를 켜면 그 상태가 눈에 보인다. 빈 자리는 분명히 많은데 전부 잘게 나뉘어 있어서, 어느 조각도 큰 파일 하나를 통째로 받지 못한다. 총량은 멀쩡한데 덩어리의 크기만 먼저 무너진 상태다.
건조지의 풀숲에서도 같은 모양의 결핍이 관측된다. 풀이 덮은 면적은 아직 절반쯤 되는데, 그 안에서 큰 덩어리만 유독 빨리 사라지는 구간이 있다. 총량만 보면 아직 여유가 있어 보이지만, 없어지는 순서는 큰 것부터다. Kéfi 등이 2007년 Nature에 낸 논문은 이 결핍을 사막화가 가까워졌다는 신호로 읽자고 제안했다. 닮은 것은 여기까지다. 이 글이 다루는 것은 저장장치가 아니라 100×100 격자 위에서 굴러가는 식생 모델이고, 우리가 직접 굴려 얻은 수치다.
임계 전이는 원래 긴 시계열로 읽는다
생태계가 어느 문턱을 넘어 다른 상태로 갑자기 넘어가는 현상을 임계 전이(critical transition)라고 부른다. 초원이 사막이 되는 일, 맑던 호수가 녹조로 뒤덮이는 일이 여기에 든다. 문제는 넘어가기 전에 그 낌새를 읽는 방법이다.
표준 답은 임계 감속(critical slowing down)이다. 계가 문턱에 가까워지면 작은 교란에서 원래대로 돌아오는 데 걸리는 시간이 길어진다. 그 결과 측정값의 분산이 커지고, 연이은 측정 사이의 자기상관도 함께 올라간다. 세 신호는 모두 같은 뿌리에서 나온다. 문턱이 정확히 어디인지 몰라도 쓸 수 있다는 것이 이 방법의 장점이다.
이 방법에는 값이 비싼 전제가 하나 붙는다. 분산이든 자기상관이든 시간을 따라 늘어선 측정값이 있어야 계산되므로, 한 지점을 여러 해에 걸쳐 규칙적으로 재 온 기록이 필요하다. 사막화가 걱정되는 건조지 대부분에는 그런 기록이 없다. 계가 문턱 쪽으로 움직이고 있다는 사실 자체가 시간축에서만 드러나는 것이라, 기록이 없으면 방법도 없다.
기록이 있더라도 조건이 하나 더 붙는다. 문턱에 닿기 한참 전부터 관측이 촘촘하게 쌓여 있어야 한다. 조기경보의 값어치는 얼마나 일찍 뜨느냐에 있는데, 정작 그 이른 시점의 자료가 가장 부실한 것이 보통이다. 그러니 시간축에서 읽는 한, 한 번 찍은 사진에서는 아무 신호도 나오지 않는다.
한 시점의 사진에서 사막화 전조를 읽는다 — 식생 패치 크기 분포의 축 바꾸기
Kéfi 등의 제안은 축을 바꾸는 것이었다. 시간을 여러 번 재는 대신 공간을 한 번 재자는 것이다. 한 시점의 식생 배치에서 풀숲 덩어리(패치) 하나하나의 크기를 재고, 크기별로 덩어리가 몇 개인지 세어 그래프로 그린다. 가로축이 크기, 세로축이 개수다. 재는 대상이 덮인 면적의 총량이 아니라 덩어리 하나하나라는 점이 핵심이다.
건강한 곳에서 이 그래프는 멱법칙(power law) 모양이 된다. 크기가 10배가 되면 개수가 그 거듭제곱만큼 줄어든다는 뜻이고, 로그-로그 축에 그리면 점들이 직선으로 놓인다. 그 직선의 기울기가 지수 $\gamma$다. 멱법칙에서 중요한 것은 큰 덩어리가 많다는 점이 아니라, 아주 큰 덩어리도 드물게나마 있다는 점이다.
방목이 심한 곳에서는 그 직선의 오른쪽 끝이 아래로 꺾인다. 어느 크기를 넘어서면 덩어리가 급격히 드물어지고 결국 아예 없어진다. 저자들은 이 이탈의 정체를 큰 패치의 결핍이라고 적었다.
논문은 지중해 건조 생태계 아홉 곳에서 이 그래프를 그렸다. 스페인·그리스·모로코 세 나라에서 방목 강도가 낮은 곳, 중간인 곳, 높은 곳을 각각 골랐다. 결과는 깔끔하게 갈렸다. 저방목 세 곳은 전부 순수 멱법칙이 가장 잘 맞았고, 지수는 1.23·1.06·1.18로 세 나라에서 서로 닮았다. 방목이 있는 나머지 여섯 곳은 전부 꺾인 쪽이 잘 맞았으며, 꺾이기 시작하는 크기는 86 cm에서 254 cm 사이였다. 여기서 현장의 패치 크기는 면적이 아니라 테이프를 따라 잰 선분 길이다.
여기서 결론은 이미 나와 있다. 큰 덩어리가 없다는 것 자체가 경보다. 남은 절반은 그 신호가 어떻게 만들어지는지, 그리고 그것을 지표로 쓸 수 있는지를 다룬다.
"방목이 셀수록 지수가 낮아진다"로 읽으면 안 된다. 꺾인 여섯 곳만 놓고 보면 중방목에서 고방목으로 갈 때 지수가 오히려 오른다(스페인 0.312→0.354, 그리스 0.270→0.760, 모로코 0.155→0.839). 저자들의 주장은 지수가 방목에 비례해 내려간다가 아니라, 멱법칙에서 이탈한다는 것이다.
세포자동자가 이 패턴을 어떻게 만드는가
논문은 같은 이탈을 세포자동자로 재현한다. 한 변 50 cm짜리 격자 칸은 세 상태 중 하나다. 식생이 있는 칸(+), 비어 있지만 다시 식물이 들어올 수 있는 칸(0), 표층이 망가져 씨앗이 발아하지 못하는 퇴화 칸(−)이다.
칸은 네 방향 이웃만 본다. 규칙은 네 줄이다. 식생 칸은 사망률 $m$으로 빈 칸이 되고, 빈 칸은 퇴화율 $d$로 퇴화 칸이 되며, 퇴화 칸은 이웃에 식생이 있을수록 빨리 빈 칸으로 되돌아온다. 방목은 오직 $m$을 올리는 것으로만 모델에 들어간다.
네 번째 줄이 정착이다. 빈 칸에 새 식생이 들어오는 비율은 두 항의 곱인데, 앞 항은 씨앗이 어디서 오는지를 담고 뒤 항은 이미 자리 잡은 식생이 새 정착을 얼마나 깎는지를 담는다.
식 1에서 $\rho_+$는 격자 전체의 식생 비율이고, $q(+\mid 0)$는 그 빈 칸의 네 이웃 중 식생인 비율이다. 뒤 항의 $b$는 건조도를 담은 값이고, $c$는 이미 있는 식생이 새 정착을 깎는 경쟁 계수다. 앞 항이 국소 촉진이 박힌 자리다. 논문이 쓴 값은 $\delta=0.1$이니 씨앗의 90%는 격자 전체가 아니라 바로 옆 칸에서 온다. 이웃에 풀이 있으면 새 풀이 더 잘 붙고, 그렇게 붙은 풀이 다시 옆자리를 불러들인다.
우리가 직접 돌려본 결과 — 피복률보다 덩어리 척도가 먼저 무너진다
이 규칙을 그대로 코드로 옮겨 사망률만 0.06에서 0.16까지 0.01 간격으로 올려 가며 굴렸다. 격자는 100×100, 시드는 다섯 개, 번인 3,000스텝 뒤의 2,000스텝을 매 스텝 평균했다.
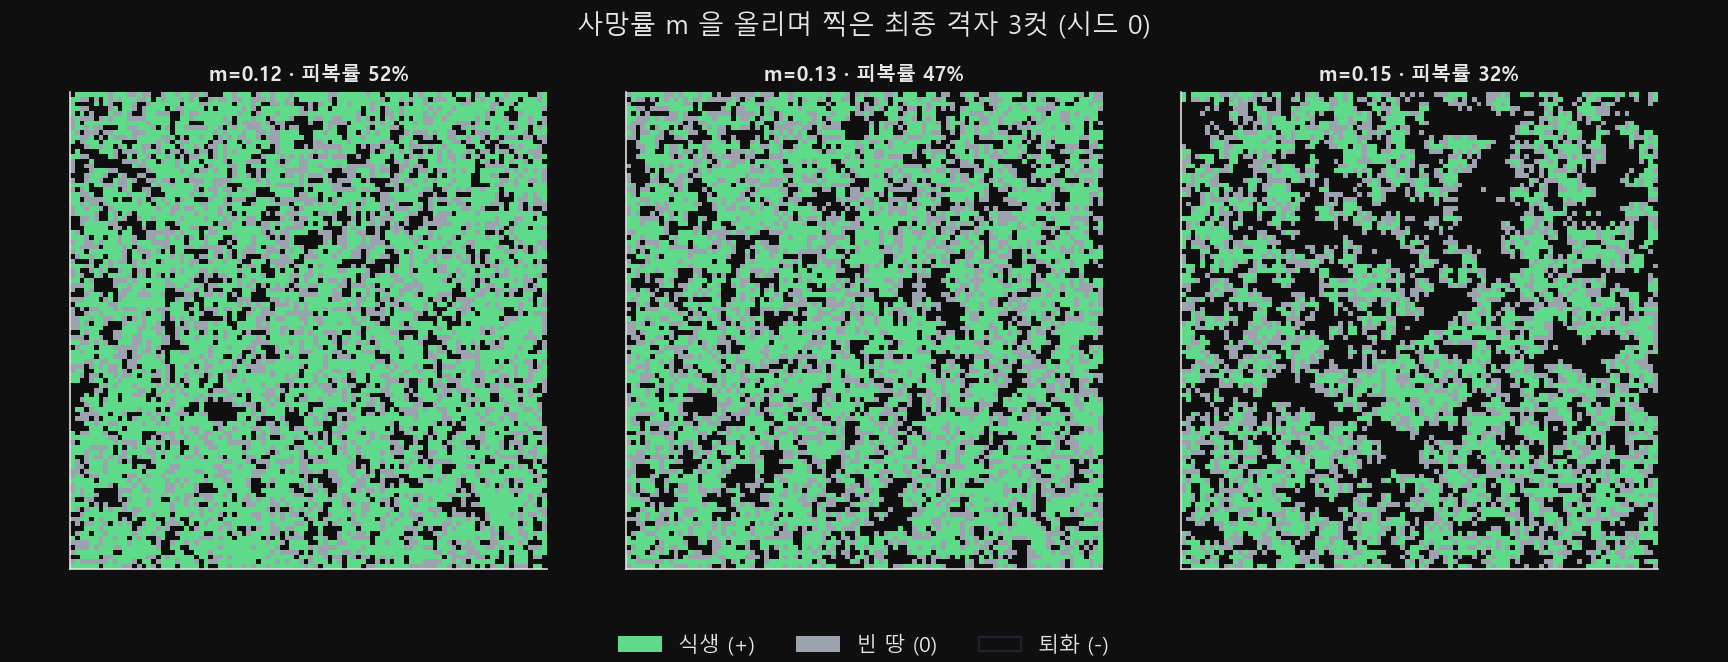
그림 1를 눈으로 보면 초록이 조금씩 줄어드는 정도다. 오른쪽 컷이 성기다는 것은 알겠지만, 곧 사막이 된다는 인상까지는 아니다. 같은 격자에서 덩어리를 세어 크기별 개수를 로그-로그로 그리면 이야기가 달라진다. 멱법칙이면 점들이 직선으로 놓이고, 꺾인 분포는 그 직선에 지수 꼬리 하나가 곱해진 모양이 된다.
식 2에서 꺾이는 자리를 정하는 값이 $S_x$다. 크기가 $S_x$를 넘어서면 개수가 멱법칙보다 훨씬 빠르게 줄어든다. 저자들의 정의도 그대로 "그 위에서 개수가 멱법칙보다 빨리 감소하는 패치 크기"다.
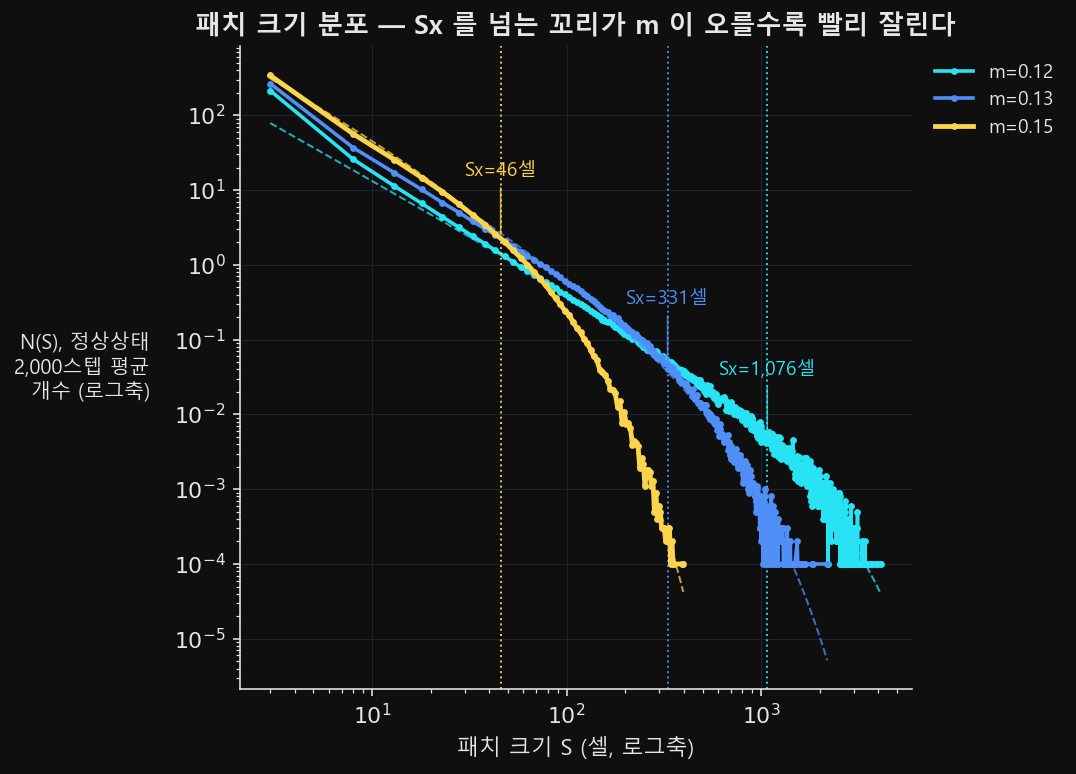
그림 2에서 세 계열은 왼쪽 절반이 거의 겹친다. 작은 덩어리의 개수 분포는 사망률이 올라도 크게 달라지지 않는다. 갈리는 곳은 오른쪽 끝뿐이다. 이제 사망률을 가로축으로 놓고 총량과 덩어리 척도를 함께 그린다.

그림 3의 두 곡선이 이 글의 수치다. 사망률을 0.12에서 0.14로 올리면 피복률은 52%에서 41%로, 5분의 1쯤 준다. 같은 구간에서 덩어리 크기가 꺾이는 척도 Sx는 2,976셀에서 134셀로 22분의 1이 된다. 두 비율 모두 사망률 0.12에서의 값을 분모로 잰 것이다.
한 가지는 분명히 해 둔다. 사망률을 0.11 이하로 낮추면 꺾임이 사라지지만, 그 구간을 건강한 멱법칙이라 부를 수는 없다. 피복률이 60%를 넘는 구간, 그러니까 사망률이 0.10 이하일 때는 격자를 가로지르는 덩어리 하나가 전체의 절반 이상을 차지한다. 그 탓에 지수가 0.13에서 0.55 사이로 매우 얕게 나온다. 사망률 0.11에서는 피복률이 57%이고 그 덩어리가 아직 남아 있지만, 지수는 1.18로 논문이 보고한 멱법칙 상태에 가장 가깝다.
왜 고전 임계계와 부호가 반대인가
여기서 한 번 걸리는 곳이 있다. 바람이 훑고 지나가는 열대림이나 파도가 때리는 홍합밭 같은 고전적인 임계계에서는 멱법칙이 전이점에서만 나타난다. 그런데 이 모델에서는 반대로 멱법칙이 건강한 상태의 표지다.
이유는 교란이 무엇을 건드리는지에 있다. 고전계의 교란은 나무나 홍합처럼 자리를 차지한 대상을 직접 없애고, 그 빈 자리 옆이 다시 약해지면서 공간을 타고 번진다. 이 모델의 교란인 퇴화는 이미 비어 있는 칸에서만 일어난다. 식생 칸이 곧바로 퇴화 칸이 되는 경로가 없다.
The existence of a third status, recolonizable, as a necessary stage between susceptible and disturbed constrains the spatial propagation of the disturbance.
Kéfi et al., Nature 449 (2007)중간 상태 하나가 끼어 있어서 교란이 스스로 번지지 못한다는 말이다. 그래서 분포를 빚는 주체가 교란이 아니라 식생 쪽의 정착과 재생 규칙이 된다.
이 재현은 방향만 논문과 같고 크기는 다르다. 논문은 사망률이 오를 때 지수가 1.75에서 0으로 떨어진다고 보고하는데, 이 격자에서는 지수가 1.6~1.8로 거의 평평한 채 Sx만 2,976셀에서 27셀로 내려간다. 이 글의 재현 수치는 전부 우리 격자의 값이며 논문 값이 아니다.
2009년, 스페인 29곳에서 기준선이 서지 않았다
논문의 마지막 문단은 열려 있었다. 멱법칙에서의 이탈이 현장의 사막화와 정확히 어떻게 연결되는지는 앞으로 풀 문제라고 저자들이 직접 적었다. 그 질문이 2년 뒤에 돌아왔다.
Maestre와 Escudero는 2009년, 스페인의 위도 구배를 따라 반건조 스텝 29곳을 골라 같은 분석을 돌렸다. 초록의 첫 결과가 이것이다. 평가한 모든 사이트에서 꺾인 분포가 순수 멱법칙보다 잘 맞았다. 한 곳도 예외가 없었다. 건강하면 멱법칙이라는 기준선 자체가 서지 않은 것이다.
이것이 왜 문제인지는 지표를 쓰는 쪽에서 보면 분명해진다. 꺾인 분포를 경보로 삼으려면 꺾이지 않은 분포가 어딘가에서는 정상 상태로 관측돼야 한다. 스물아홉 곳이 전부 꺾여 있다면 경보등이 늘 켜져 있는 것과 같고, 늘 켜진 경보등은 아무것도 알려 주지 않는다.
두 번째 결과는 지표로서의 값어치에 관한 것이다. 꺾인 분포의 지수는 다년생 식물의 총 피복률과 아무 관계가 없었다. 사막화와 연결된 토양 변수, 그러니까 전질소·전인·유기탄소와는 음의 로그 관계가 있었지만 그뿐이었다. 반면 피복률은 같은 토양 변수들과 더 강한 양의 선형 관계를 보였다.
저자들의 결론은 두 줄이다. 멱법칙에서의 이탈은 사막화와 직결되지 않는다. 그리고 사막화에 이어진 변수를 살피려면 차라리 식물 피복률을 쓰면 된다.
이 결론이 그대로 굳지는 않았다. 이듬해 Kéfi 등의 Comment와 Maestre·Escudero의 Reply가 같은 학술지에 이어졌다. 두 편은 본문을 읽지 못했으므로, 여기서는 논쟁이 이어졌다는 사실만 적는다.
남는 것은 지표 하나를 쓰기 전에 밟아야 할 순서다. 새 지표를 손에 넣었을 때는 이 지표가 위험을 어떻게 알리는지보다, 멀쩡한 곳에서 어떤 값이 나오는지가 실제로 확인됐는지를 앞에 둔다. 예컨대 상권의 빈 점포를 덩어리로 세어 보는 지표를 만들었다면, 멀쩡한 상권에서 그 분포가 어떤 모양인지부터 재 두어야 한다. 경보 쪽 값만 모아 놓고 보면 어떤 지표든 그럴듯해 보인다. 신호가 없다는 것과 신호를 견줄 바탕이 없다는 것은 다른 이야기이고, 2009년의 결과는 뒤쪽이었다. 무너지지 않은 분포를 손에 쥐기 전까지는, 무너진 분포도 알아볼 수 없다.
더 읽기
- Kéfi S. et al., "Spatial vegetation patterns and imminent desertification in Mediterranean arid ecosystems", Nature 449, 213–217 (2007). https://doi.org/10.1038/nature06111
- Maestre F.T., Escudero A., "Is the patch size distribution of vegetation a suitable indicator of desertification processes?", Ecology 90, 1729–1735 (2009). https://doi.org/10.1890/08-2096.1
- 이어진 논쟁 두 편 — Comment https://doi.org/10.1890/09-1915.1 · Reply https://doi.org/10.1890/10-0391.1